- 1. Giriş: Bir Nöronun Dar Yolculuğu
- 2. Çift Zincir Kırıkları: Kanserden Beyne
- 3. Suçlu Kim? Topoizomeraz IIβ ve Mekanik Tuzak
- 4. Nöronlar Neden Ölmüyor? Üç Kritik Mekanizma
- 4.1. 1. Nükleer Zarf Yırtılması Yok
- 4.2. 2. Genomik “Güvenli Bölgeler”
- 4.3. 3. Homolog Olmayan Uç Birleştirme (NHEJ)
- 5. Onarım Başarısız Olduğunda: Zamanlamanın Önemi
- 5.1. Lig4ND1-cre: Göç Başlangıcında Silme
- 5.2. Lig4Gabra6-cre: Göç Sonrası Silme
- 5.3. Rotarod: Motor Öğrenme Etkilenmiyor
- 6. Transkripsiyonel Değişiklikler: Sessiz Bir Kriz
- 7. Her Nöron Kendi DNA Tarihini Yazıyor: Genomik Bireysellik
- 8. Klinik ve Gelecek Perspektifler
- 8.1. 1. Nörogelişimsel Hastalıklar
- 8.2. 2. Nörodejeneratif Hastalıklar
- 8.3. 3. Kanser Biyolojisi
- 9. Sonuç: Evrimin Kabul Ettiği Bir Bedel
Kyoto Üniversitesi liderliğindeki uluslararası bir ekip, gelişen beyinde göç eden nöronların rutin olarak DNA çift zincir kırıklarına (DSB) uğradığını keşfetti. Bu “hasar” aslında sağlıklı beyin gelişiminin normal bir parçası ama onarım mekanizmaları aksadığında, yetişkinlikte ilerleyici denge bozukluklarına yol açıyor. Sinaps morfolojisi bozulmadan, hücre ölümü olmadan, sadece koordinasyon kayboluyor.
Giriş: Bir Nöronun Dar Yolculuğu
Beyninizdeki her nöron, embriyonik ve doğum sonrası gelişim sırasında inanılmaz bir yolculuk yapar. Serebellar granül nöronu (CGN) örneğinde: Dış granül tabakada (EGL) doğar, iç EGL’ye geçer, oradan da moleküler tabaka (ML) boyunca sıkışarak iç granül tabakaya (IGL) ulaşır. Bu yolculuk, hücre çekirdeklerinin şekil değiştirerek bu dar aralıklardan geçmesini gerektirir.
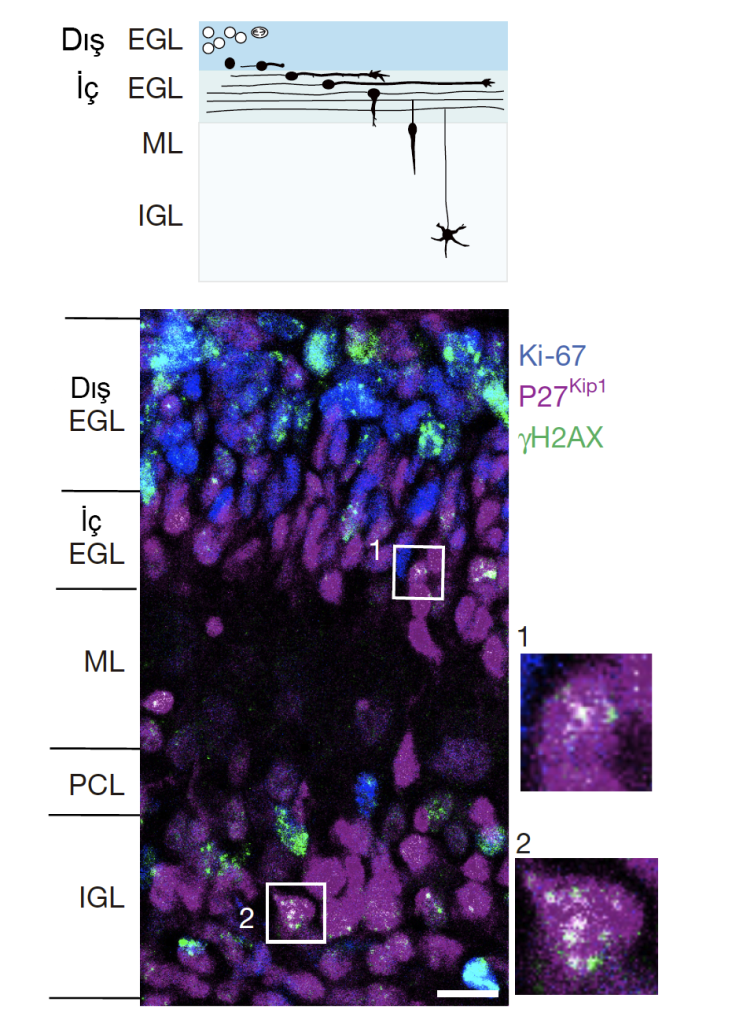
Kyoto Üniversitesi Entegre Hücre-Malzeme Bilimleri Enstitüsü (WPI-iCeMS) önderliğinde (Tokyo Üniversitesi, Osaka Üniversitesi, Singapur Ulusal Üniversitesi, Tokyo Metropolitan Tıp Bilimleri Enstitüsü) yürütülen çalışma, bu fiziksel yolculuğun beklenmedik bir bedelini ortaya koydu: Göç eden nöronlarda, DNA’nın her iki zincirinin de koptuğu, en şiddetli DNA hasarı türü meydana geliyor. Ve bu hasar sadece serebellar granül nöronlarıyla sınırlı değil; Purkinje hücreleri ve kortikal nöronlar da aynı süreci yaşıyor.

“Gelişen beyin, nöronal hasarı tolere etmek ve verimli bir şekilde onarmak için evrimleşmiş görünüyor. Ancak bu toleransın sınırlarını ve onarım eksik kaldığında neler olduğunu anlamak, çeşitli nörolojik koşulları anlamamıza bizi daha da yaklaştırıyor.” — Prof. Mineko Kengaku
Çift Zincir Kırıkları: Kanserden Beyne
DNA çift zincir kırıkları (DSB’ler), genellikle kanser, hücre ölümü ve mutasyonlarla ilişkilendirilen en şiddetli DNA hasarı türüdür. Ancak bu araştırma, bu “katastrofik” hasarın aslında sağlıklı beyin gelişiminin rutin ve fizyolojik bir parçası olduğunu gösteriyor.
Araştırmacılar, gelişen serebral ve serebellar kortekslerdeki nöron göçünü mikrokanallar ve Transwell sistemleri kullanarak modellediler. Floresan işaretleyiciler (γH2AX, 53BP1-mNG) ile donatılmış hücreler, dar kanallardan geçerken çok belirgin DNA hasarı sinyalleri gösterdi. Ancak hücreler kanallardan çıktıktan sonra bu hasar 24 saat içinde neredeyse tamamen ortadan kalktı. TUNEL testi ve aktif kaspaz 3 boyaması negatif kaldı, yani apoptoz gözlenmedi.
Suçlu Kim? Topoizomeraz IIβ ve Mekanik Tuzak
Peki, fiziksel bir sıkışma nasıl olup da kimyasal bir DNA kopmasına yol açıyor?
Cevap, Topoizomeraz IIβ (TOP2β) enziminde yatıyor. Bu enzim, DNA’nın süper-sarmal yapısındaki torsiyonel (burulma) gerilimi gidermek için geçici olarak DNA zincirlerini keser, geçiş sağlar ve tekrar birleştirir. Tıpkı bir kablo tamircisinin düğümlü kabloyu kesip düzeltip tekrar birleştirmesi gibi.
Ancak nöronlar dar boşluklardan sıkışarak geçerken, çekirdekleri şekil değiştirir ve kromatin üzerinde aşırı mekanik gerilim oluşur. TOP2β bu gerilimi gidermek için devreye girer, ancak mekanik basınç altında enzim katalitik döngüsünün ortasında sıkışıp kalır. DNA’nın uçları açık kalır ve “TOP2β-DNA kovalent kompleksi” (TOP2cc) adı verilen bir ara ürün oluşur.
Makalede bu mekanizma şöyle kanıtlanmış:
- Etoposid (TOP2 inhibitörü, 1 nM) ile mekanik stres altındaki TOP2cc’ler stabilize edildi ve γH2AX sinyali 36 saate kadar uzatıldı.
- Epoksomisin (proteazom inhibitörü) ile TOP2cc temizliği bloke edildi çünkü sıkışmış TOP2cc’ler önce proteazom tarafından parçalanıyor, sonra NHEJ ile onarılıyor.
- Topotekan (TOP1 inhibitörü) ise etkisiz kaldı; hasar spesifik olarak TOP2β kaynaklı, genel bir topoizomeraz etkisi değil.
Nöronlar Neden Ölmüyor? Üç Kritik Mekanizma
1. Nükleer Zarf Yırtılması Yok
Kanser hücrelerinde kısıtlı göç, nükleer zarf (NE) yırtılmasına ve sitoplazmik nükleazların (örneğin TREX1) DNA’ya saldırmasına yol açar. Ancak nöronlarda:
- cGAS (NE yırtılması belirteci) çekirdek çeperinde birikim göstermiyor.
- Lamin B1 ve H4K20me3 boyaması ile NE yırtılma oranının %3’ün altında kaldığı görüldü.
- Nöronlar çok düşük düzeyde lamin A ifade ederler; bunun yerine lamin B reseptörü (LBR) baskındır. Bu farklı nükleer lamina yapısı, NE’nin mekanik deformasyona karşı daha dayanıklı olmasını sağlarken farklı bir dinamik kazandırır.
2. Genomik “Güvenli Bölgeler”
END-seq (genom çapında DSB haritalama) analizi, kırıkların aktif promotörlerde ve gen gövdelerinde değil, şu bölgelerde yoğunlaştığını gösterdi:
- Lamina ile ilişkili bölgeler (LAD’lar) – 2.42 kat zenginleşme
- Heterokromatin – özellikle transkripsiyonel olarak inaktif bölgeler
- LINE retrotranspozonları – tekrarlayıcı DNA elemanları
Yani hasar, hücrenin hayati fonksiyonları için kritik olan aktif genlere isabet etmiyor. CTCF/RAD21 bağlanma bölgelerinde (kromatin döngü çapalarında) veya uzun nöronal genlerde anlamlı bir artış yok.
3. Homolog Olmayan Uç Birleştirme (NHEJ)
Nöronlar hücre döngüsünden çıkmış (mitoz sonrası) hücreler olduğu için, homolog rekombinasyon (HR) kullanılamaz. Bunun yerine:
- Ku70 ile γH2AX odakları aynı bölgede yoğunlaşıyor (NHEJ belirteci).
- RAD51 odakları gözlenmiyor (HR belirteci).
- SCR7 (Ligase 4 inhibitörü) ve NU7441 (DNA-PK inhibitörü) DSB çözünmesini bloke ediyor.
- B02 (RAD51 inhibitörü, HR engelleyicisi) ise etkisiz kalıyor.
Onarım Başarısız Olduğunda: Zamanlamanın Önemi
Araştırmacılar, NHEJ’nin temel bileşeni Ligase 4 (LIG4) genini iki farklı zamanda silerek sistemi test ettiler:
Lig4ND1-cre: Göç Başlangıcında Silme
- Neurod1-cre aracılığıyla, CGN’ler göçe başlar başlamaz LIG4 geni silinir.
- Sonuç: γH2AX birikimi P8’den itibaren IGL’de belirginleşir ve 12 aya kadar devam eder.
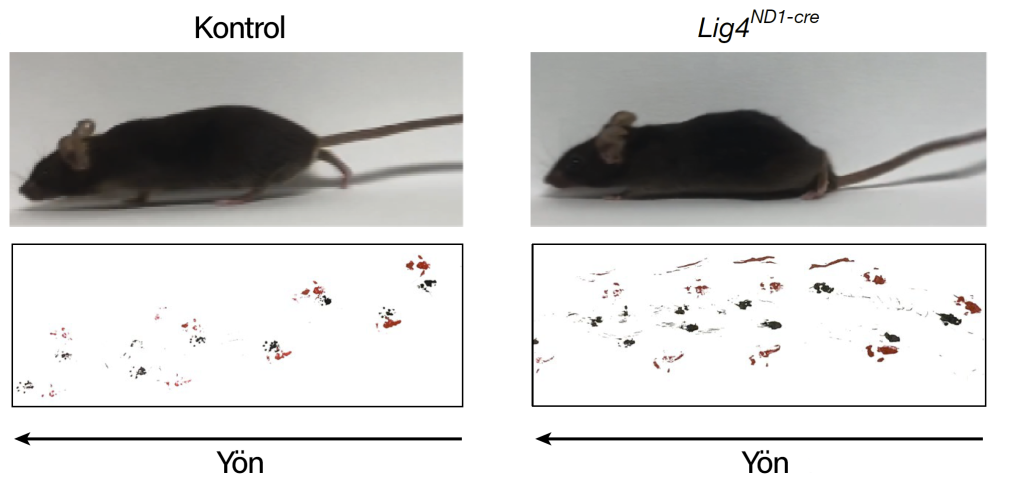
- Bu fareler normal görünür, ağırlık ve kas gücü korunur ancak 3 aylıktan itibaren denge kirişi testinde (balance beam) arka ayaklarının daha sık kaydığı gözlenir.
- Yürüme analizinde; kısa adım uzunluğu, artan arka ayak açıklığı, düzensiz yürüyüş saptanmıştır.
Lig4Gabra6-cre: Göç Sonrası Silme
- Gabra6-cre aracılığıyla, CGN’ler IGL’ye ulaştıktan sonra LIG4 silinir.
- Sonuç: γH2AX birikimi 3 aydan sonra yavaşça başlar, yaşla artar.
- Motor bozukluklar da geç başlangıçlı ve ilerleyici olarak gelişir.
Bu karşılaştırma, göç sırasındaki mekanik stresin beynin en büyük içsel DNA hasar kaynaklarından biri olduğunu kanıtlıyor. Göç öncesi LIG4 kaybı, birikimi çok daha erken ve şiddetli hale getiriyor.
Rotarod: Motor Öğrenme Etkilenmiyor
İlginç bir şekilde, rotarod testinde (dönen çubuk üzerinde kalma süresi) Lig4ND1-cre ve kontrol fareleri arasında fark yok. Bu, hasarın:
- Motor öğrenme ve kas gücünü etkilemediğini,
- Sadece serebellar koordinasyon ve denge fonksiyonunu bozduğunu gösteriyor.
Transkripsiyonel Değişiklikler: Sessiz Bir Kriz
2 aylık Lig4ND1-cre farelerinde RNA-seq analizi (50,531 gen) sadece 336 farklı ifade edilen gen (DEG) gösterdi — log2FC >2.5 olan çok az. Bu “sınırlı” değişimler bile önemli:
Azalanlar:
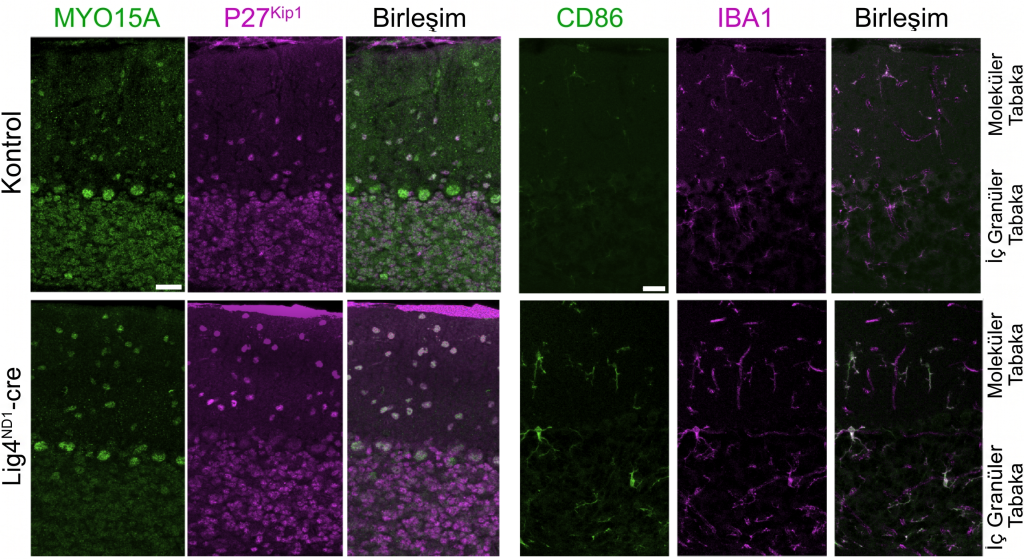
- Sinaptik fonksiyon genleri (MYO15A, Synpr, Cacna1g)
- Nöronal gelişim ve akson projeksiyonu genleri
Artanlar:
- Stres yanıtı genleri
- İmmün yanıt genleri (CD86 mikrogliyalarda artış)
Önemli bir ayrım: IBA1 boyaması ile mikrogliyal aktivasyon (nöroinflamasyon) gözlenmedi. CD86 artışı, klasik bir enflamasyondan ziyade hafif, kronik bir stres yanıtı olarak yorumlanıyor.
En çarpıcı bulgu: Lig4ND1-cre’nin artan gen kümesi, CKp25 nörodejenerasyon modelindeki erken faz DNA hasarlı kortikal nöronlarla anlamlı örtüşme gösteriyor. Bu, göç sırasındaki fizyolojik DNA hasarının onarılamadığında nörodejeneratif süreçlerle ortak moleküler yollar paylaşabileceğini düşündürüyor.
Her Nöron Kendi DNA Tarihini Yazıyor: Genomik Bireysellik
Makalenin en derin felsefi çıkarımı: Tüm nöronlar aynı DNA şablonundan başlar, ancak bu araştırma gösteriyor ki:
“Tüm nöronlar aynı DNA’dan köken alır, ancak DNA hasarı ve onarımı, bu mekanik yolculuk sırasında bireysel nöronlar arasında küçük genetik farklılıklar yaratabilir. Bu tarihin bir kısmı genomun kendisine yazılabilir.”
NHEJ, kusursuz bir onarım değildir; bazen küçük ekleme/eksilme (indel) mutasyonları bırakır. Her nöronun göç yolculuğu benzersizdir ve maruz kaldığı mekanik stres farklı DNA kırıklarına neden olabilir. Bu, tek tek nöronların kendi “genomik tarihçelerini” taşıması anlamına gelir ve bu somatik mozaisizm, nörogelişimsel ve nörodejeneratif hastalıklarla bağlantılı olabilir.
Klinik ve Gelecek Perspektifler
1. Nörogelişimsel Hastalıklar
Otizm, şizofreni ve diğer nörogelişimsel bozuklukların bazı alt tiplerinde nöron göçü anomalileri bilinmektedir. DNA onarım kapasitesindeki bireysel varyasyonlar rol oynuyor olabilir.
2. Nörodejeneratif Hastalıklar
Alzheimer, Parkinson ve ataksi gibi hastalıklarda DNA hasarı birikimi uzun süredir risk faktörüdür. Bu çalışma, beynin gelişim aşamasındaki “fizyolojik” DNA hasarının yaşam boyu birikim potansiyeli taşıdığını gösteriyor. Özellikle serebellar ataksiler ve genom instabilitesi sendromları (LIG4 sendromu, ataksi-telanjiektazi) bu ışıkta yeniden değerlendirilebilir.
3. Kanser Biyolojisi
Nöronların mekanik strese karşı geliştirdiği “NE yırtılmadan DSB toleransı” mekanizması, kanser hücrelerinin invazyonunda gözlemlenen NE yırtılması-DSB mekanizmasından farklıdır. Bu farklılıklar, metastatik hücrelerin zayıf noktalarını hedeflemek için yeni stratejiler sunabilir.
Sonuç: Evrimin Kabul Ettiği Bir Bedel
Beyin, evrimin en karmaşık yapılarından biridir. Bu çalışma, bu karmaşıklığın bedelinin sadece metabolik veya enerjetik değil, genomik olduğunu gösteriyor. Nöronlar, “doğru” yere ulaşabilmek için DNA’larının kırılmasını göze alıyorlar ve evrim, bu kırıkları hızla ve güvenli bir şekilde onarabilecek mekanizmaları seçmiş:
- Nükleer zarf yırtılmadan (kanser hücrelerinden farklı olarak)
- Hayati genleri koruyarak (inaktif kromatin tercihi)
- NHEJ ile hızla onararak
Ancak bu sistem kusursuz değil. Onarım mekanizmalarındaki genetik varyasyonlar (örneğin LIG4 mutasyonları), gelişim sırasındaki fizyolojik DNA hasarının birikimine yol açarak, hücre ölümü olmadan, sinaps morfolojisi bozulmadan, sadece yavaş ilerleyen bir koordinasyon kaybına neden olabilir.
Kengaku ve ekibinin çalışması, beyni anlamak için sadece elektriksel sinyallere veya sinaptik bağlantılara değil, her nöronun DNA’sındaki sessiz, mekanik yolculuk hikayelerine de bakmamız gerektiğini hatırlatıyor. Beyin, aynı DNA’nın kopyalarından oluşan bir organ değil; her hücresi, kendi benzersiz genomik deneyimleriyle şekillenmiş dinamik bir sistemdir.