- 1. 1. Değişen Bakış Açısı: CENP-E’nin Geleneksel ve Yeni Rolü
- 1.1. 1.1. Eski Model: Motor Protein Olarak CENP-E
- 1.2. 1.2. Yeni Bulgular: Düzenleyici Rolünün Ortaya Çıkışı
- 2. 2. Kromozom Hizalanmasının Ayrı Aşamaları
- 2.1. 2.1. Başlatma ve Hareket Ayrımı
- 2.2. 2.2. End-on Bağlanmanın Stabilizasyonu
- 3. 3. Aurora Kinazlarla Karmaşık Etkileşim
- 3.1. 3.1. İnhibitör Rolü
- 3.2. 3.2. Negatif Geri Bildirim Döngüsü
- 4. 4. Klinik Önemi ve Kanser Bağlantısı
- 4.1. 4.1. Kromozom İstikrarsızlığı (CIN)
- 4.2. 4.2. Tedavi Hedefi Potansiyeli
- 4.3. 4.3. Kombine İnhibisyon Stratejisi
- 5. 5. Sonuç ve Gelecek Perspektifleri
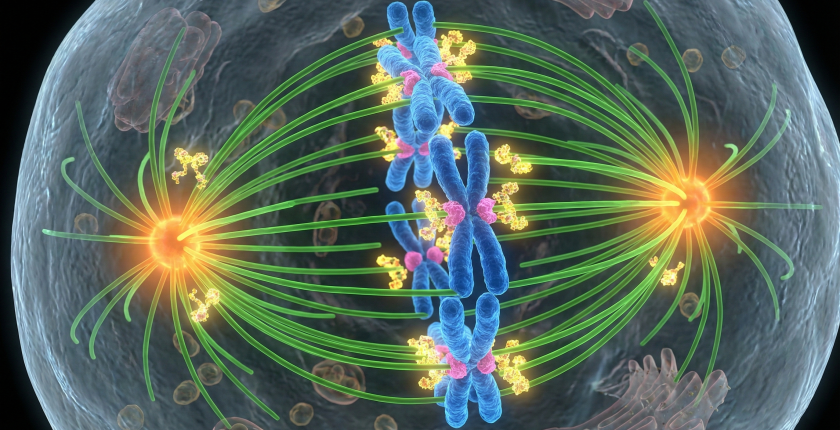
Yakın zamanda yapılan çalışmalar, kromozom diziliminde CENP-E proteininin rolüne dair anlayışımızda köklü bir değişikliğe işaret ediyor. Gelişmiş mikroskopi teknikleriyle elde edilen veriler, bu proteini sadece bir “motor” olarak değil, kritik bağlantıları stabilize eden “bir düzenleyici” olarak yeniden tanımlıyor.
1. Değişen Bakış Açısı: CENP-E’nin Geleneksel ve Yeni Rolü
1.1. Eski Model: Motor Protein Olarak CENP-E
On yıllardır, CENP-E (Centromere-associated protein E), mitoz sırasında kinetokorlara (kromozom merkezindeki yapılar) bağlı bir kinesin motor proteini olarak biliniyordu. Bu kabul görmüş model, CENP-E’nin mikrotübüller boyunca kromozomları eşitlenme düzlemine (metafaz plakası) doğru sürdüğünü öne sürüyordu. Özellikle iğ uçlarına yakın “polar kromozomlar” için bu motor aktivitesinin kritik olduğu savunuluyordu.
1.2. Yeni Bulgular: Düzenleyici Rolünün Ortaya Çıkışı
Yapılan son araştırmalar, CENP-E’nin rolünü sadece bir motor olmaktan çıkararak, kromozom hizalanması sürecinde kilit bir düzenleyici olarak tanımlıyor. Gelişmiş canlı hücre görüntüleme teknikleriyle elde edilen veriler, CENP-E’nin asıl görevinin kromozomları fiziksel olarak hareket ettirmekten ziyade, onların hareketine izin verecek “end-on” (uçtan uca) bağlanma olayını başlatmak ve stabilize etmek olduğunu gösteriyor.
Araştırmalar, CENP-E inhibe edildiğinde polar kromozomların sadece %20’sinin yaklaşık 30 dakika içinde hizalanmaya başladığını, CENP-E fonksiyonu geri yüklendiğinde ise bu oranın %85’in üzerine çıktığını ortaya koyuyor.
2. Kromozom Hizalanmasının Ayrı Aşamaları
2.1. Başlatma ve Hareket Ayrımı
LLSM (lattice light-sheet microscopy) ile yapılan gözlemler, hizalanmanın iki farklı biyomekanik adımdan oluştuğunu ortaya koymuştur:
- Başlatma (Initiation): Kinetokor-mikrotübül bağlantısının end-on formata dönüşümü ve stabilize edilmesi
- Hareket (Movement): Stabilize edilmiş kromozomun metafaz plakasına doğru fiziksel hareketi
Araştırmalar, CENP-E’nin varlığından bağımsız olarak kromozom hareket hızının benzer olduğunu göstermiştir. Bu bulgu, CENP-E’nin kromozomları doğrudan süren bir motor olmadığını, aksine bu hareketin başlatılması için gerekli moleküler koşulları oluşturduğunu göstermektedir.
2.2. End-on Bağlanmanın Stabilizasyonu
CENP-E’nin yeni keşfedilen rolü, kritik olan end-on kinetokor-mikrotübül bağlantılarının oluşumunu kolaylaştırmaktır. Süper çözünürlüklü mikroskopi teknikleriyle yapılan gözlemler, CENP-E fonksiyonunun kinetokorlarda end-on bağlantı belirteci olan Astrin proteininin birikimini artırdığını ve fibrous corona adlı yapının uzaklaşmasını hızlandırdığını göstermiştir. Bu süreçte İğ Oluşum Kontrol Noktası (Spindle Assembly Checkpoint-SAC) proteinlerinin zamanla azaldığı da gözlemlenmiştir.
3. Aurora Kinazlarla Karmaşık Etkileşim
3.1. İnhibitör Rolü
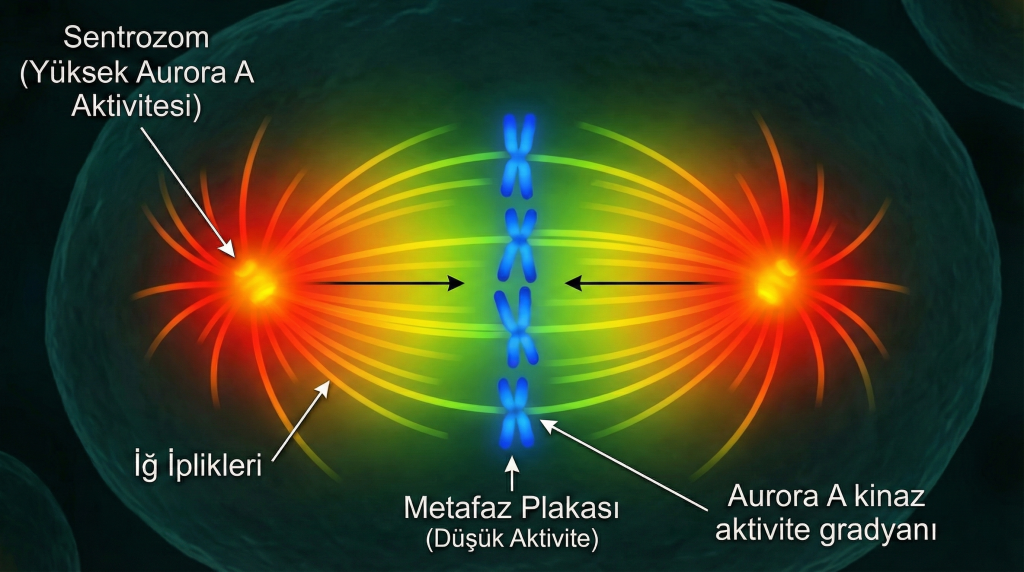
Aurora A ve B kinazları, hücre bölünmesinde kromozom dizilimini düzenleyen anahtar moleküllerdir. Bu proteinler, özellikle polar kromozomlarda, hizalanmanın başlatılmasını inhibe eder. Bunu, mikrotübül bağlantısını bozacak şekilde kinetokor proteinlerini fosforile ederek ve fibrous corona adlı yapının genişlemesini teşvik ederek yaparlar.
Aurora A, sentrozomlarda (iğ kutupları) yoğunlaşarak bir aktivite gradyanı oluşturur. Kromozomlar sentrozoma ne kadar yakınsa, Aurora A aktivitesi o kadar yüksektir. Sentrozomları olmayan hücrelerde yapılan araştırmalar, Aurora A aktivitesinin azaldığında CENP-E olmadan bile polar kromozomların hizalanmaya başlayabildiğini göstermiştir.
Aurora B ise kinetokorun dış kısmında bulunan KMN ağındaki proteinleri (Ndc80/Hec1 ve Knl1) fosforile ederek mikrotübül bağlanma afinitesini düşürür.
3.2. Negatif Geri Bildirim Döngüsü
CENP-E, Aurora B’nin bu inhibisyonunu BubR1 ve PP2A aracılığıyla dengeleyen bir geri bildirim döngüsü oluşturur:
- CENP-E, kinetokora bağlı BubR1 ile etkileşime girer
- BubR1, PP2A fosfatazını devreye sokar
- PP2A, Aurora B’nin fosforilasyonunu tersine çevirir
- Sonuç: Stabil end-on bağlantılar ve hizalanma başlangıcı
Bu dengeleme mekanizması, kromozomların sadece doğru zaman ve yerde hizalanmasına olanak tanır.
4. Klinik Önemi ve Kanser Bağlantısı
4.1. Kromozom İstikrarsızlığı (CIN)
CENP-E’nin düzgün çalışmaması, kromozomların doğru şekilde hizalanmasını ve ayrılmasını engelleyerek kromozom istikrarsızlığı (CIN) ve anöploidi‘ye yol açar. Bu durum, birçok solid tümörün belirgin özelliğidir ve tümör ilerlemesine katkıda bulunur.
4.2. Tedavi Hedefi Potansiyeli
Kanser hücrelerinde CENP-E’nin görülme sıklığı, tedavi seçiminde belirleyici bir faktördür::
- Yüksek CENP-E seviyesi: Akciğer adenokarsinomu, over kanseri gibi tümörlerde CENP-E inhibisyonu tedavi edici olabilir
- Düşük CENP-E seviyesi: Hepatosellüler karsinomda düşük CENP-E, anöploidii ve kötü prognoz ile ilişkilidir
4.3. Kombine İnhibisyon Stratejisi
Yapılan çalışmalar, KIF18A adlı başka bir motor proteini ile CENP-E’nin işbirliğini ortaya koymuştur. Normal hücrelerde bu proteinlerden birinin fonksiyonu bozulduğunda, diğeri telafi edebilirken, kanser hücrelerinde düşük CENP-E seviyesi, KIF18A inhibisyonuna karşı aşırı duyarlılık yaratır. Bu sentetik letalite fenomeni, kanser hücrelerini seçici olarak hedefleyen yeni tedavi stratejileri için umut vaat etmektedir.
5. Sonuç ve Gelecek Perspektifleri
CENP-E’nin rolüne dair bu yeni anlayış, temel hücre biyolojisi bilgilerimizi güncellemeyi gerektiriyor. Artık bu proteini sadece bir motor olarak değil, Aurora kinazlarla karmaşık etkileşim içinde kromozom hizalanmasının zamanlamasını ve doğruluğunu sağlayan kritik bir kontrol noktası olarak görmeliyiz.
Klinik uygulamalar açısından:
- CENP-E seviyeleri, tedavi yanıtını öngörmede biyobelirteç olarak kullanılabilir
- Kombine inhibitör stratejileri, özellikle yüksek kromozom istikrarsızlığı oranına sahip kanserler için etkili olabilir
- Sentrozom ve Aurora A aktivitesinin rolü, mevcut kanser türlerine göre farklı tedavi stratejileri gerektirir
Bu keşif, temel bilim ile klinik uygulama arasındaki köprünün ne kadar hızlı kurulabileceğini gösteriyor. Gelişmiş görüntüleme ve genetik analiz yöntemleriyle moleküler mekanizmaların aydınlatılması, doğrudan kanser tedavisine yönelik yenilikçi yaklaşımları da beraberinde getiriyor.
Kaynaklar
- https://www.nature.com/articles/s41586-025-09915-x
- https://pmc.ncbi.nlm.nih.gov/articles/PMC2921712
- https://www.frontiersin.org/journals/molecular-biosciences/articles/10.3389/fmolb.2024.1366113/full
- https://pmc.ncbi.nlm.nih.gov/articles/PMC10978661
- https://www.nature.com/articles/s41467-025-64148-w
- https://scitechdaily.com/textbooks-challenged-scientists-discover-new-mechanism-of-cell-division