- 1. Bir Paradoks: Yağ Yakıcısı Olmayanlar Neden Yağsız Kalıyor?
- 2. Çekirdekteki Keşif: HSL’nin “Yol Arkadaşları”
- 3. Farelerdeki Genetik Senaryo: Nükleer HSL, Yağ Dokusu İçin “Sınırlayıcı Faktör”
- 4. Enzimatik Aktivite? Gereksiz. En Azından Çekirdekte.
- 5. PGC-1α: HSL’nin Çekirdek Hedefi
- 6. TGF-β ve SMAD3: HSL’nin Çekirdek Bileti
- 7. Nükleer Trafik: CRM1, NES ve PKA’nin Dansı
- 8. Obezitede Nükleer HSL Birikimi: Koruyucu mu, Yıkıcı mı?
- 9. İnsanlarda FPLD6: Nadir Ama Öğretici
- 10. Evrimsel Bir Bakış: HSL Ailesi, Çekirdeği Sever
- 11. Sonuç: Yağın Kalitesi, Miktarı Kadar Önemli
1964’ten beri bilim insanları, hormon-duyarlı lipazı (HSL) vücudun “acil durum yakıt anahtarı” olarak tanımlıyordu. Ama Toulouse Üniversitesi’ndeki bir ekip, bu proteinin yağ hücrelerinin çekirdeğinde yani DNA’nın saklandığı o kutsal komuta merkezinde tamamen farklı bir kimliğe büründüğünü keşfetti.
Bir Paradoks: Yağ Yakıcısı Olmayanlar Neden Yağsız Kalıyor?
HSL’nin hikâyesi, 1964’te Vaughan, Berger ve Steinberg’in klasik makalesiyle başlar. O günden bu yana HSL, adipositlerdeki lipit damlacıklarında depolanan trigliseritleri parçalayan, katekolaminlerle (adrenalin gibi) harekete geçirilen bir lipaz olarak bilinir. Mantıken, bu enzimi olmayan bir organizma yağ biriktirmeli, hatta obez olmalıydı.
Ama gerçek tam tersiydi.
Hem HSL geni (LIPE) silinmiş farelerde hem de insanlardaki nadir HSL mutasyonlarında (FPLD6) beklenmedik bir tablo ortaya çıktı: lipodistrofi. Yani yağ dokusunun kaybı. Vücut yağ depolamak yerine, sağlıklı adipoz dokuyu yitiriyordu. Bu paradoks, 2000’li yıllardan beri metabolizma araştırmacılarını meşgul ediyordu.
Toulouse Üniversitesi I2MC Enstitüsü’nden Dominique Langin ve ekibinin yayımladığı çalışma, bu gizemin anahtarını buldu: HSL, sadece sitoplazmada yağ yakmıyordu; aynı zamanda çekirdekte, yağ dokusunun varlığını koruyan bir düzenleyiciydi.
Çekirdekteki Keşif: HSL’nin “Yol Arkadaşları”
Araştırma ekibi, konfokal mikroskopi, hücre fraksiyonasyonu ve bağışıklık sondalı elektron mikroskopi kullanarak HSL’nin hem fare hem de insan adipositlerinin çekirdeğinde lokalize olduğunu gösterdi. İnsan adipositlerinde sitoplazmaya kıyasla çekirdekte HSL yoğunluğu daha düşük olsa da (yaklaşık 1,6 kat), protein oradaydı.
Ama HSL orada tek başına değildi.
Çekirdek özütleriyle (nükleer ekstrakt) yapılan immünopresipitasyon ve kitle spektrometresi analizleri, HSL’nin çekirdekte şaşırtıcı “yol arkadaşları”yla etkileştiğini ortaya koydu:
- RNA Polimeraz II (RNA Pol II): Transkripsiyonun merkezi motoru. Proximity ligation assay (PLA) ile HSL/RNA Pol II etkileşimi doğrulandı.
- SFPQ ve NONO: DBHS (Drosophila behavior/human splicing) ailesinden, RNA uç birleştirme, taşıma, düzenleme ve transkripsiyon düzenlemesinde görev alan çok yönlü proteinler.
Bu veriler, HSL’nin çekirdekte sadece “öylece duran” bir protein değil, gen ifadesinin aktif bir düzenleyicisi olduğunu gösteriyordu.
Farelerdeki Genetik Senaryo: Nükleer HSL, Yağ Dokusu İçin “Sınırlayıcı Faktör”
Langin ekibi, CRISPR-Cas9 ile üç farklı fare modeli oluşturdu:
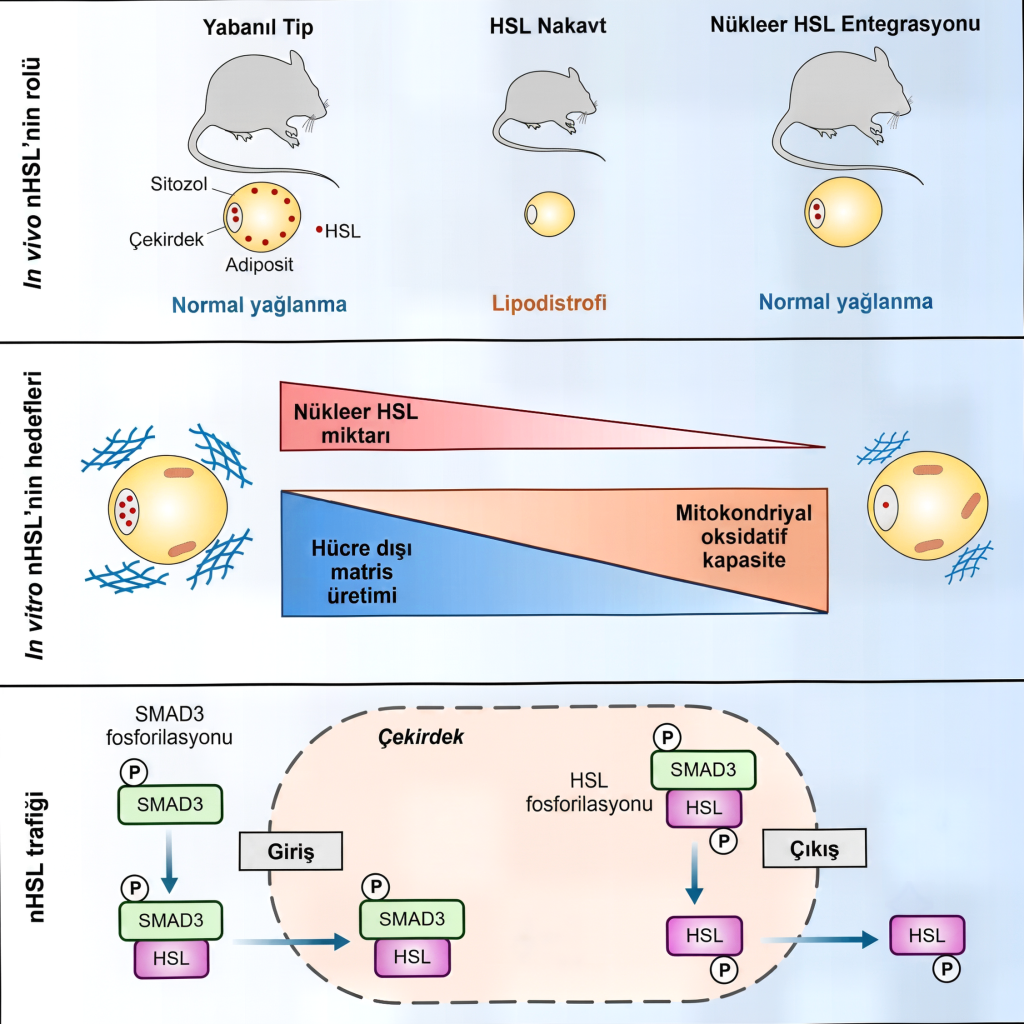
- HSL-KO (Knock-Out): HSL tamamen yok. Sonuç: Lipodistrofi, hipertrofik adipositler, yağ kütlesi kaybı.
- HSL-NLS (Nuclear Localization Signal): HSL’ye yapay bir nükleer lokalizasyon sinyali eklendi. Sonuç: HSL çekirdekte normal seviyede kaldı ama sitoplazmada ve lipit damlacıklarında neredeyse hiç yok. Enzimatik aktivite %95 düştü. Beklenen? Lipodistrofi. Gerçekleşen? Tamamen normal yağ dokusu!
- HSL-KO / HSL-NLS Heterozigotlar: Bir aleli tamamen silinmiş (KO), diğeri ise sadece çekirdeğe yönlendirilmiş (NLS). Bu farelerde nükleer HSL seviyesi, HSL-WT/HSL-NLS kontrollere göre daha düşüktü.
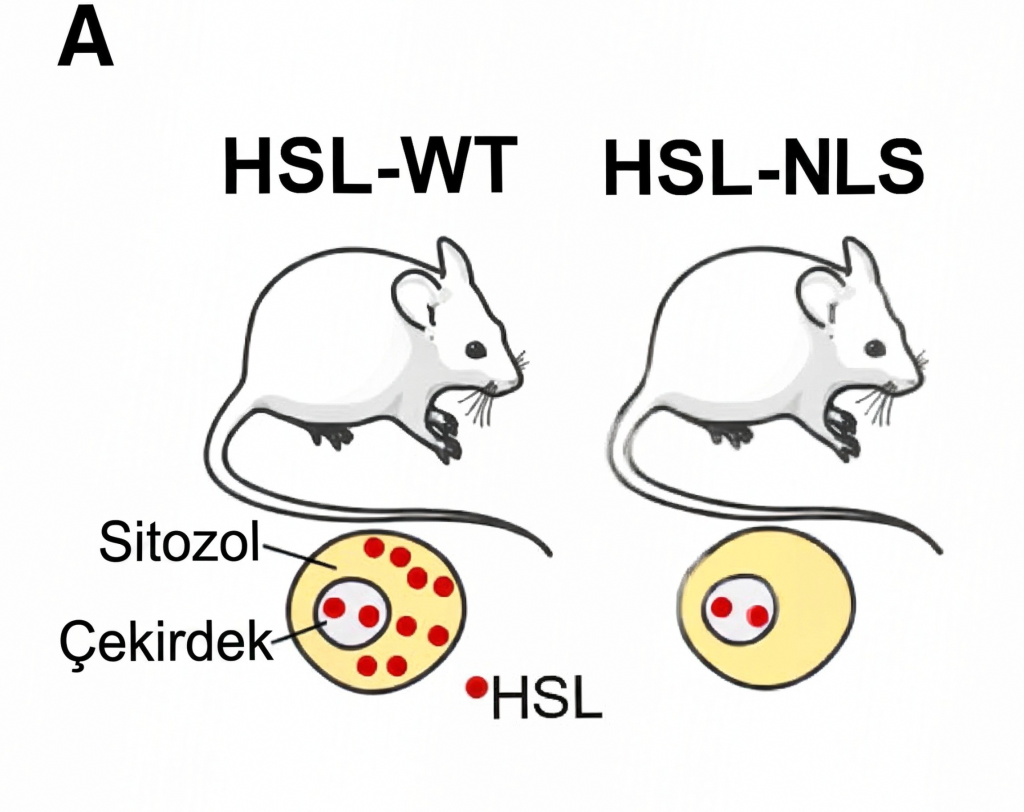
Sonuç çarpıcıydı: HSL-KO/HSL-NLS farelerinde yağ kütlesi ve yağ yastığı ağırlıkları, kontrollere göre anlamlı şekilde düşüktü. Bu, nükleer HSL miktarının yağ dokusu kütlesini korumada sınırlayıcı bir faktör olduğunu kanıtladı.
Ancak HSL-NLS erkek fareleri kısır kaldı. Çünkü testislerde HSL’nin enzimatik (lipolitik) aktivitesi, sperm olgunlaşması için gerekliydi. Bu, HSL’nin iki farklı fonksiyonunun (çekirdekteki yapısal role karşı sitoplazmaktaki enzimatik rol) dokular arasında nasıl ayrıştığının mükemmel bir örneğiydi.
Enzimatik Aktivite? Gereksiz. En Azından Çekirdekte.
HSL’nin çekirdekteki rolü, lipolizden (yağ parçalanması) tamamen bağımsız mıydı? Çalışma bu soruya dört farklı stratejiyle ‘evet’ cevabı veriyor:
- BAY 59-9435: HSL’nin katalitik bölgesine bağlanan spesifik bir inhibitör. Kronik tedavi, insan adipositlerinde mitokondriyal gen ifadesini hiç değiştirmedi.
- ATGL (PNPLA2) Susturulması: HSL’den önce trigliseritleri parçalayan ATGL’in eksikliği, mitokondriyal genleri etkilemedi. Yani lipoliz zincirindeki bir önceki basamağın kaybı, HSL eksikliğinin aksine mitokondriyal etki yaratmadı.
- HSL(s): Doğal olarak oluşan, ekson 6 atlaması nedeniyle katalitik olarak tamamen inaktif bir HSL izoformu. HEK293T hücrelerinde OXPHOS protein seviyelerini yine de düşürdü.
- HSL-S423A-NLS: Katalitik serin mutasyona uğramış (S423A), sadece çekirdekte kalan HSL. Fare yağ dokusuna AAV vektörüyle enjekte edildiğinde, OXPHOS proteinlerini düşürdü, glukoz toleransını bozdu ve insülin direncini artırdı. Hiç yağ yakmadı, ama metabolizmayı değiştirdi.
Bu bulgular, HSL’nin çekirdekteki etkisinin tamamen enzimatik aktiviteden bağımsız, protein-protein etkileşimlerine dayalı bir düzenleyici rol olduğunu kesinleştiriyor.
PGC-1α: HSL’nin Çekirdek Hedefi
Peki HSL çekirdekte tam olarak neyi düzenliyordu?
Transkripsiyon profilleme (gen analizleri) sonuçları, HSL susturulduğunda hücrenin enerji santraliyle ilgili genlerin (NDUFA10, SDHC gibi OXPHOS genleri) ve yağ yakıcı kahverengi/bej yağ hücresi belirteçlerinin (UCP1) ifadesinin arttığını gösterdi. Aynı anda TGF-β hedefleri (COL1A1, THBS1, TNC) ve hücrelerarası madde (ECM) yolakları baskılandı.
Bu mitokondriyal “patlama”nın arkasındaki anahtar, PPARGC1A (PGC-1α) geniydi.
- HSL eksikliğinde PGC-1α protein ve mRNA seviyeleri arttı.
- Daha da önemlisi, PPARGC1A pre-mRNA seviyeleri de arttı. Yani HSL, transkripsiyonun başlangıcında, PGC-1α’nın sentezini baskılıyordu.
- PGC-1α siRNA ile susturulduğunda, HSL eksikliğinin mitokondriyal genleri indükleyici etkisi tamamen ortadan kalktı.
- Ancak PGC-1α susturulması, TGF-β/ECM hedeflerinin baskılanmasını etkilemedi.
Bu, HSL’nin çekirdekte iki ayrı yolak üzerinde çalıştığını gösteriyor:
- Yolak 1: PGC-1α üzerinden mitokondriyal metabolizmayı baskıla.
- Yolak 2: TGF-β/SMAD3 üzerinden ECM genlerini düzenle.
TGF-β ve SMAD3: HSL’nin Çekirdek Bileti
Peki HSL çekirdeğe nasıl giriyordu?
Çalışma, HSL’nin TGF-β sinyal yolağının ana mediatörü SMAD3 ile fiziksel olarak etkileştiğini gösterdi (Ko-immünopresipitasyon ve PLA ile doğrulandı). Bu etkileşim hem sitoplazmada hem çekirdekte gözlemlendi.
Ama burada kritik bir ayrım var: SMAD4 devre dışı.
- SMAD3 susturulduğunda, HSL eksikliğinin mitokondriyal ve ECM etkileri baskılandı.
- SMAD4 susturulduğunda ise hiçbir etki olmadı.
- HSL, SMAD3 ile etkileşiyordu ama SMAD4 ile etkileşmiyordu.
- TGF-β1 tedavisi, SMAD3 fosforilasyonunu ve çekirdeğe taşınmasını tetiklerken, HSL’nin de çekirdekte birikmesine yol açıyordu.
Bu, HSL’nin klasik (kanonik) TGF-β/SMAD3/SMAD4 yolağından bağımsız, adiposite özgü, bir kanonik olmayan SMAD3 kompleksi oluşturduğunu gösteriyor. HSL, adeta TGF-β sinyalinin hücre tipine özgü bir “modülatör” olarak çalışıyor.
Nükleer Trafik: CRM1, NES ve PKA’nin Dansı
HSL sürekli olarak çekirdek ile sitoplazma arasında mekik dokuyor. Bu trafik iki ana mekanizma ile kontrol ediliyor:
ÇekirdeğeGiriş (Import): TGF-β1 → SMAD3 fosforilasyonu → SMAD3/HSL kompleksi → çekirdekte birikim.
Çıkış (Export): HSL’nin düzenleyici bölgesinde, fosforilasyon bölgelerine yakın bir yerde nükleer dışa aktarım sinyali (NES) bulunuyor. Biyoenformatik analizler (LocNES, NetNES) bu sinyali öngördü.
- Leptomycin B (CRM1/eksportin 1 inhibitörü) tedavisi, HSL’nin çekirdekte birikmesine yol açtı. Yani HSL, CRM1 aracılığıyla sürekli olarak çekirdekten dışarı taşınıyor.
- Forskolin (adenilat siklaz aktivatörü, cAMP/PKA yolağını tetikler) veya β3-adrenerjik agonist CL-316,243, HSL’yi fosforile ediyor (Ser660/660; insanda Ser650) ve çekirdekten dışarıya aktarıyor.
- Açlık durumunda farelerde nükleer HSL seviyeleri düştü; tokluk durumunda daha yüksekti.
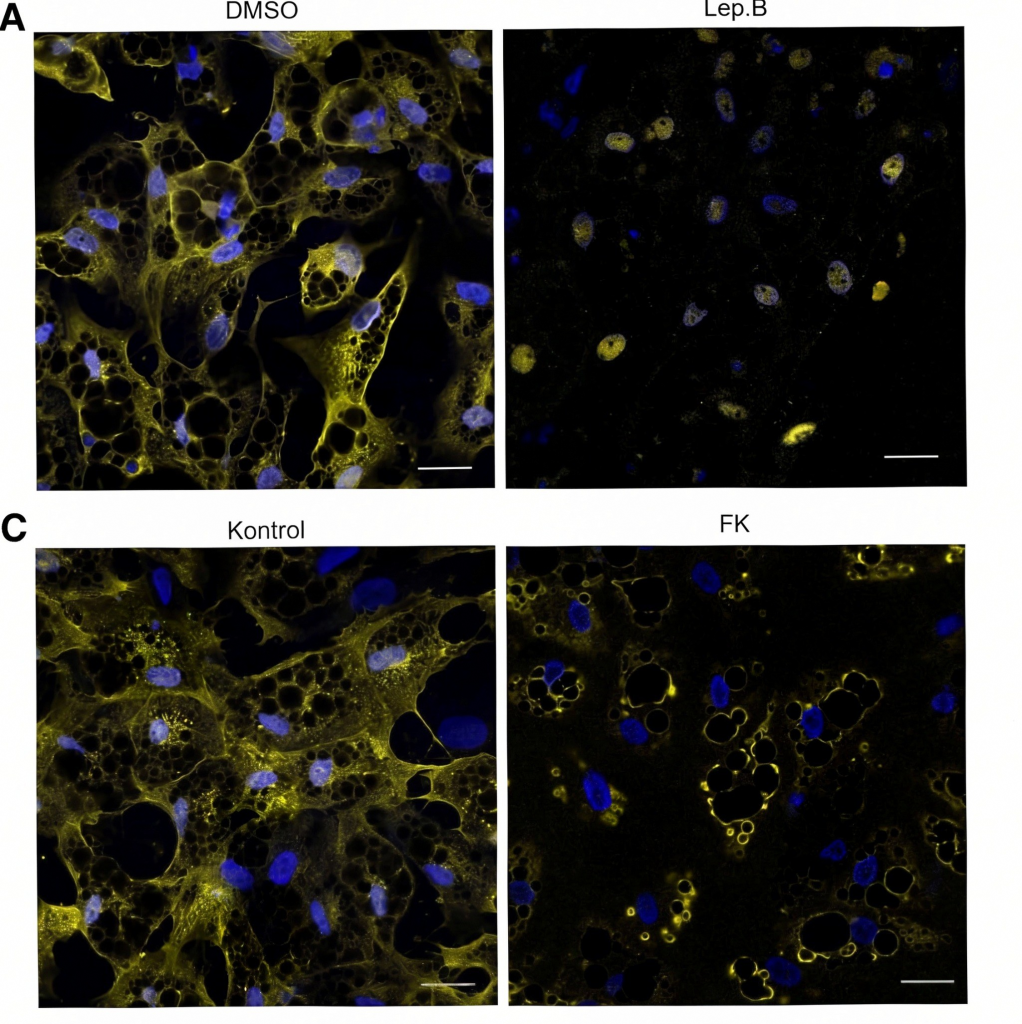
Yani metabolik duruma göre HSL’nin çekirdekteki miktarı dinamik olarak değişiyor: Beslenme durumunda ve obezitede (TGF-β yüksek, katekolamin duyarlılığı düşük) HSL çekirdekte birikiyor; açlık veya egzersizde (katekolamin yüksek) HSL lipit damlacıklarına ve sitoplazmaya çıkıyor.
Obezitede Nükleer HSL Birikimi: Koruyucu mu, Yıkıcı mı?
Yüksek yağlı diyet (HFD) beslenen farelerde ve obezite modellerinde adiposit çekirdeklerinde HSL miktarı artıyor. SMAD3/HSL kompleksi de obez farelerde daha fazla.
Ama bu artış metabolik olarak “iyi” bir şey değil. Çalışma, bu durumu şöyle yorumluyor:
- Obezitede adipoz doku TGF-β üretimini artırır ve ECM (fibrozis) birikir.
- Aynı zamanda katekolamin duyarlılığı azalır, yani PKA aracılığıyla HSL dışa aktarımı zayıflar.
- Sonuç: HSL çekirdekte hapsolup kalır, PGC-1α’yı baskılamaya devam eder, mitokondriyal metabolizma düşer, ECM üretimi artar.
- Bu da adiposit disfonksiyonunu, insülin direncini ve sistemik metabolik bozukluğu besler.
Yani obezitedeki yüksek nükleer HSL, koruyucu bir adaptasyon değil, patolojik bir kısır döngünün parçasıdır.
İnsanlarda FPLD6: Nadir Ama Öğretici
HSL mutasyonlarıyla ilişkili ailevi parsiyel lipodistrofi tip 6 (FPLD6) oldukça nadirdir. Hastalarda:
- Bacaklarda ve ayaklarda yağ dokusunun erimesi
- Gövdede ve boyun bölgesinde anormal yağ birikimi (lipomlar)
- Miyopati, hipertrigliseridemi, diyabet, hipertansiyon
- Karaciğer büyümesi (hepatomegali)
Bazı vakalarda retinal dejenerasyon da bildirilmiştir; bu durum HSL’nin retinil ester hidrolaz aktivitesiyle A vitamini metabolizmasına olan katkısıyla açıklanmaktadır. Bu, HSL’nin enzimatik olmayan çekirdek fonksiyonlarının yanı sıra, bazı dokularda hâlâ enzimatik aktivitesinin de hayati olduğunu gösterir.
Evrimsel Bir Bakış: HSL Ailesi, Çekirdeği Sever
Langin ve ekibi, çalışmanın tartışma bölümünde HSL ailesinin evrimsel geçmişine dikkat çekiyor:
- Bitkilerde: HSL benzeri GID1 proteini, giberellin hormonu için çözünür bir reseptör işlevi görür ve çekirdekte yer alır. Enzimatik aktivitesi yoktur.
- Bakterilerde (E. coli): Aes proteini, transkripsiyon aktivatörü MalT’yi protein-protein etkileşimiyle inhibe eder.
Yani HSL ailesinin nükleer/transkripsiyonel rolleri, evrimsel olarak çok eski ve korunmuş olabilir. Memelilerdeki lipolitik fonksiyon, belki de daha “yeni” bir uzmanlaşmadır.
Sonuç: Yağın Kalitesi, Miktarı Kadar Önemli
60 yıllık bir “gerçeğin” yeniden yazılması, bilimin kendini sürekli sorgulamasının en güzel örneğidir. HSL artık sadece “yağ yakıcı” değil; aynı zamanda yağ hücrelerinin çekirdeğinde mitokondriyal metabolizmayı frenleyen, hücrelerarası maddeyi (ekstrasellüler matriks) düzenleyen ve yağ dokusu kütlesini koruyan bir “çift ajan”.
Bu keşif, metabolik hastalıklara yaklaşımımızı değiştirebilir:
- Eski paradigma: Yağı azaltmak.
- Yeni paradigma: Yağı sağlıklı tutmak. Yani adipositlerin çekirdeğindeki HSL/PGC-1α/TGF-β dengesini restore etmek.
Eğer vücudunuzdaki yağ hücreleri bir orkestra olsaydı, HSL hem davulcu (lipoliz) hem de orkestra şefi (çekirdekteki transkripsiyonel kontrol) olurdu. Artık bu yeni şefin; PGC-1α’nın öncül mRNA’sını (pre-mRNA) baskılayan, SMAD3 ile dans eden ve CRM1 aracılığıyla sahneye girip çıkan o karmaşık notalarını okumaya başlıyoruz.
Kaynaklar
- https://www.cell.com/cell-metabolism/fulltext/S1550-4131(25)00433-4
- https://www.frontiersin.org/journals/genetics/articles/10.3389/fgene.2024.1417613/full
- https://www.eurekalert.org/news-releases/1101998
- https://www.sciencedaily.com/releases/2025/11/251123115712.htm
- https://www.genengnews.com/topics/translational-medicine/obesity-and-fat-metabolism-a-new-role-for-nuclear-hsl
- https://www.sciencedirect.com/science/article/abs/pii/S0006291X11003111?via%3Dihub
- https://www.cell.com/cell-metabolism/fulltext/S1550-4131(11)00215-4
- https://www.jci.org/articles/view/129190